Sperling Nội tiết học Nhi khoa, Ấn bản thứ 5 – Biên dịch: Ths.Bs. Lê Đình Sáng
Sperling Pediatric Endocrinology, Fifth Edition
Tác giả: Sperling, Mark A., MD – Nhà xuất bản: Elsevier Inc.
PHẦN III. NỘI TIẾT HỌC TRẺ EM VÀ THANH THIẾU NIÊN
Chương 22. Các hội chứng Đa tuyến Tự miễn
Autoimmune Polyglandular Syndromes
Bimota Nambam; Michael J. Haller; William E. Winter; Desmond Schatz
Sperling Pediatric Endocrinology, 22, 884-903
MỞ ĐẦU
Các hội chứng đa tuyến tự miễn (APS) là những tập hợp không phổ biến của các bệnh tự miễn đặc hiệu cho từng cơ quan, được đặc trưng bởi sự xuất hiện của nhiều hơn một bệnh tự miễn ở một cá nhân bị ảnh hưởng (Bảng 22.1). Mặc dù các rối loạn nội tiết tự miễn thường ảnh hưởng đến một cơ quan duy nhất, sự liên quan tự miễn đa cơ quan của cả cơ quan nội tiết và không nội tiết, thứ phát sau sự mất dung nạp tự thân, là một đặc điểm của APS.
Dung nạp là một trạng thái sinh lý trong đó hệ thống miễn dịch của một người nhận ra các kháng nguyên tự thân và không tạo ra phản ứng miễn dịch chống lại chúng. Nếu dung nạp không được thiết lập hoặc bị mất đi, bệnh tự miễn và hậu quả là bệnh tật có thể xảy ra. Mặc dù sự phá vỡ dung nạp tự thân vẫn chưa được giải thích đầy đủ, sự hiểu biết ngày càng tăng về sự tương tác phức tạp giữa di truyền và môi trường, và các quá trình miễn dịch bất thường do đó đã xác định được một số cơ chế có thể. Để hiểu được những cơ chế này, một cái nhìn tổng quan ngắn gọn về cách dung nạp tự thân được thiết lập và duy trì là cần thiết.
CÁC CƠ CHẾ LÀM NỀN TẢNG CHO DUNG NẠP
Giới thiệu
Tuyến phòng thủ miễn dịch đầu tiên của cơ thể, sau các hàng rào sinh lý chống lại các mầm bệnh ngoại lai xâm nhập, là nhánh miễn dịch bẩm sinh. Miễn dịch bẩm sinh là một phản ứng không đặc hiệu được trung gian bởi sự biểu hiện của các gen dòng mầm, không yêu cầu phơi nhiễm trước với kháng nguyên và cung cấp sự bảo vệ tức thì. Tuy nhiên, hệ miễn dịch bẩm sinh không thể hiện trí nhớ miễn dịch và không cung cấp sự bảo vệ lâu dài. Tuyến phòng thủ tiếp theo chống lại các kháng nguyên ngoại lai là hệ miễn dịch thích ứng. Mặc dù hệ miễn dịch thích ứng giả định rằng tất cả các kháng nguyên ngoại sinh đều có khả năng gây hại, nó tạo ra các phản ứng đặc hiệu với kháng nguyên. Trong một phản ứng miễn dịch thích ứng bình thường, sinh vật chủ phải phân biệt kháng nguyên tự thân với kháng nguyên không tự thân; tạo ra một phản ứng miễn dịch; loại bỏ hoặc loại trừ kháng nguyên gây bệnh; và bảo vệ vật chủ khỏi bị tổn thương, rối loạn chức năng cơ quan, và thậm chí tử vong. Sự phân biệt tự thân/không tự thân được thực hiện bởi hệ miễn dịch thích ứng (đặc hiệu) bằng một cơ chế sử dụng các thụ thể bề mặt tế bào T và B đặc hiệu. Các thụ thể tế bào T và tế bào B nhận ra các peptide và epitope kháng nguyên riêng biệt, tương ứng, và là chìa khóa cho tính đặc hiệu của phản ứng miễn dịch thích ứng. Trong khi các tế bào B và các thụ thể của chúng nhận ra các kháng nguyên hòa tan trên bề mặt tế bào của các mầm bệnh, các tế bào T và các thụ thể của chúng (TCR) chỉ nhận biết các polypeptide ngắn khi được trình diện bởi các tế bào trình diện kháng nguyên (APC), sử dụng các phân tử bề mặt tế bào chuyên biệt được mã hóa bởi phức hợp tương hợp mô chính (MHC). MHC của người được gọi là phức hợp kháng nguyên bạch cầu người (HLA). MHC lớp I (ví dụ, các phân tử HLA-A, HLA-B, và HLA-C) được tìm thấy trên tất cả các tế bào có nhân, và trình diện các peptide nội sinh có nguồn gốc từ bào tương (chẳng hạn như từ một tế bào bị nhiễm mầm bệnh) cho các tế bào T CD8. Mặt khác, các phân tử MHC lớp II (ví dụ, HLA-DP, HLA-DQ, và HLA-DR), trình diện các kháng nguyên ngoại lai (peptide) đã được nội bào hóa và xử lý bởi các APC (chẳng hạn như tế bào B, tế bào tua, và đại thực bào) cho các tế bào T CD4.
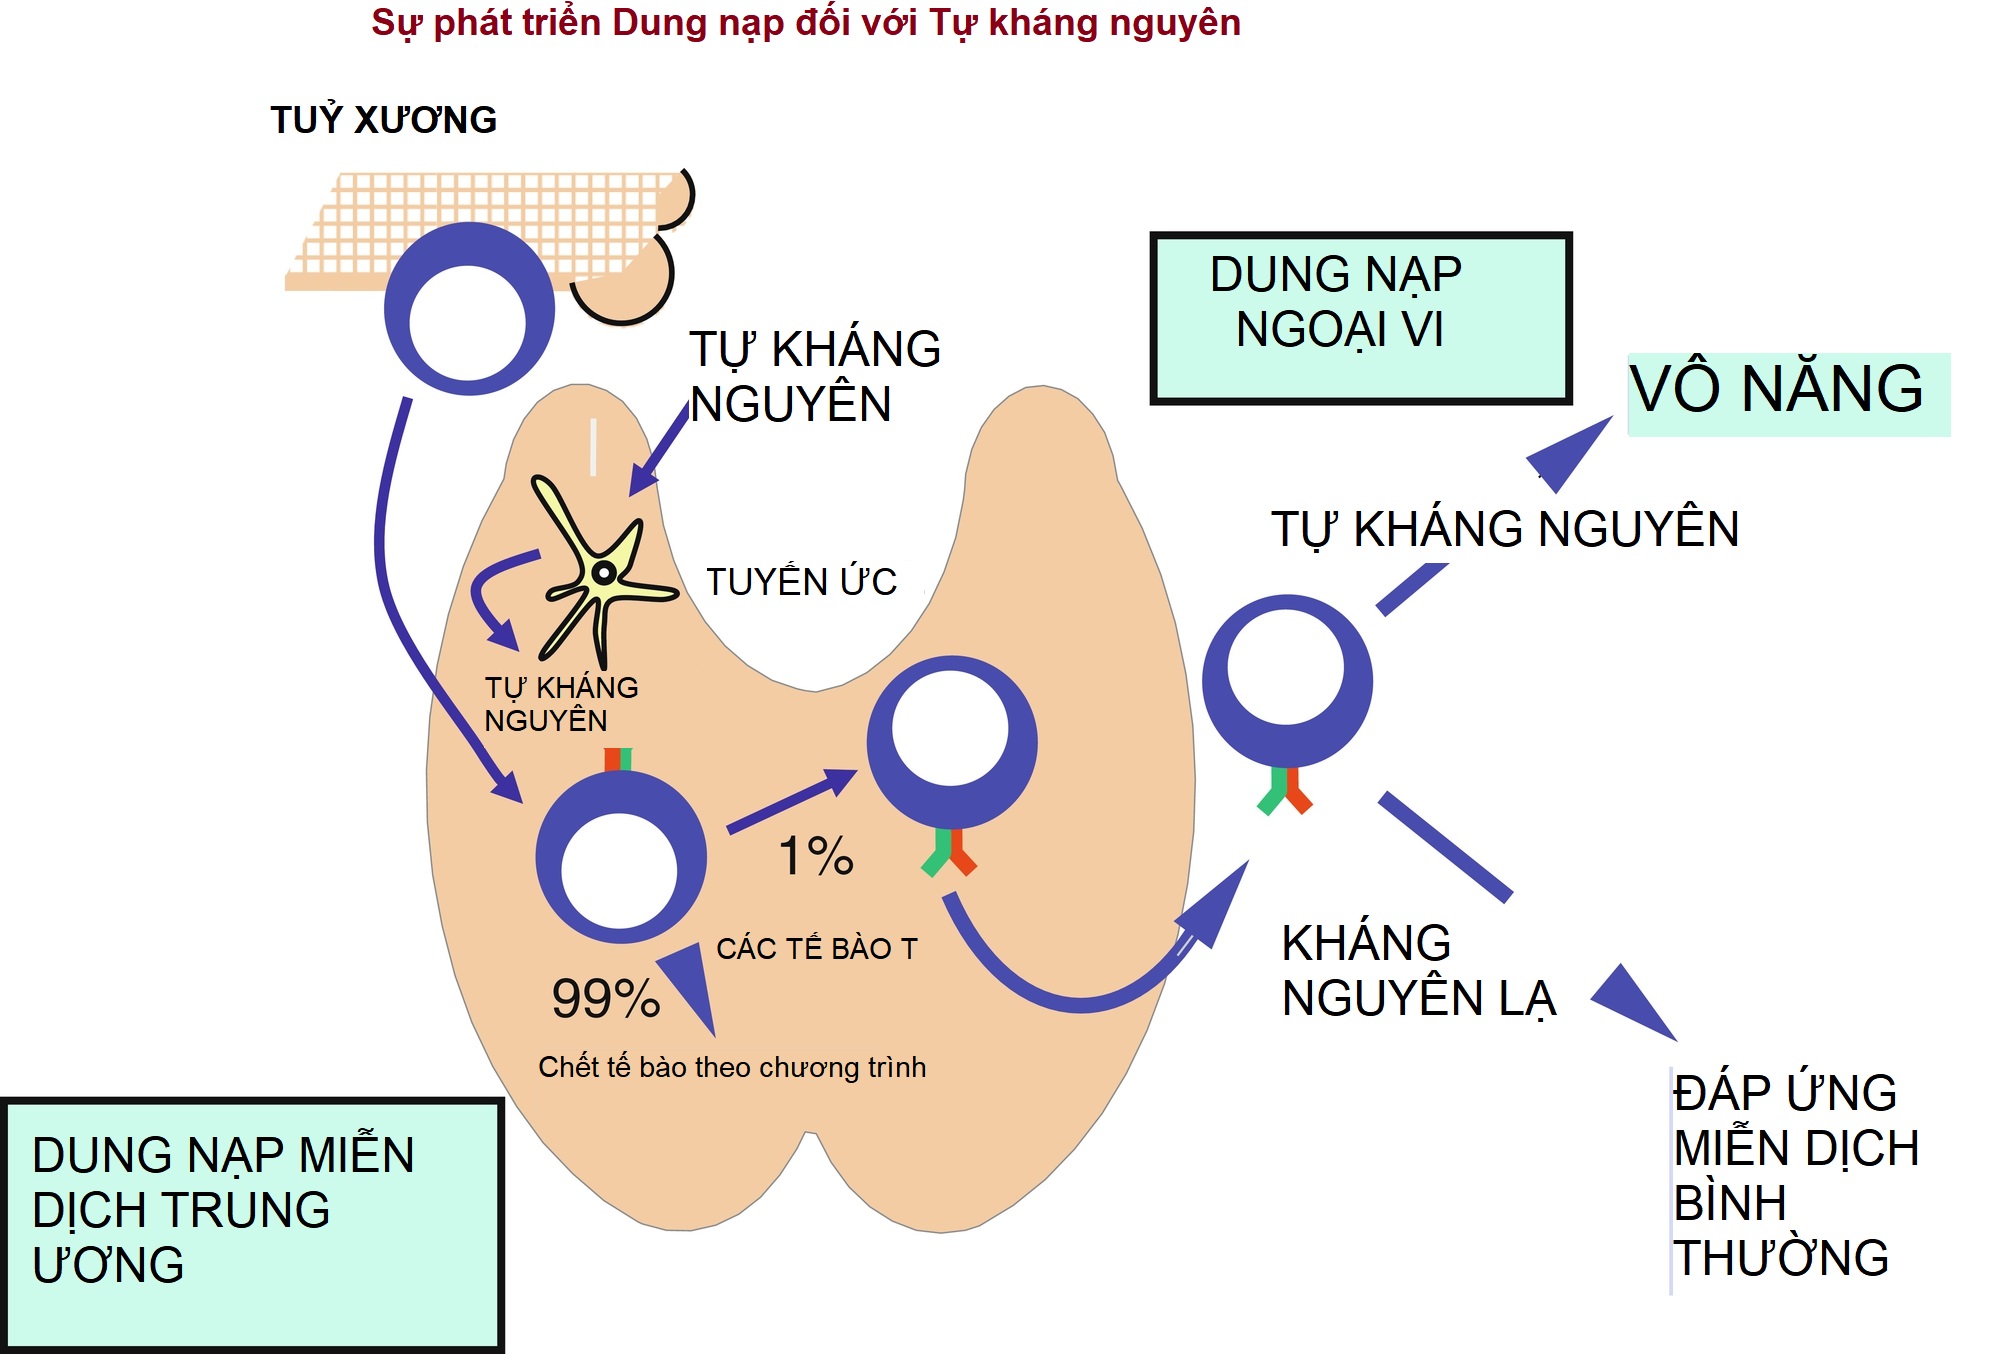
Các tế bào T ban đầu được phân loại dựa trên các protein bề mặt cụm biệt hóa (CD) của chúng, liên kết khác nhau với các kháng nguyên được trình diện trên MHC lớp I (liên kết với CD8) và lớp II (liên kết với CD4). Ví dụ, các tế bào T CD8, còn được gọi là tế bào T gây độc tế bào khi được kích hoạt, thường nhận ra các kháng nguyên được trình diện qua MHC lớp I, và trung gian một phản ứng miễn dịch đặc hiệu với kháng nguyên đó. Ngược lại, các tế bào T CD4, đóng vai trò là tế bào T hỗ trợ hoặc điều hòa, được kích hoạt khi được trình diện với các peptide qua MHC lớp II. Sự điều hòa dung nạp tự thân của tế bào T xảy ra ở hai cấp độ riêng biệt nhưng phụ thuộc lẫn nhau: dung nạp trung ương và dung nạp ngoại vi (được mô tả sau) (Hình 22.1). Dung nạp trung ương xảy ra ở tuyến ức, trong khi dung nạp ngoại vi xảy ra ở cả các mô bạch huyết và không bạch huyết. Mặc dù nhiều cơ chế liên quan đến dung nạp tự thân vẫn chưa được hiểu rõ, gần 2 thập kỷ mô tả gen điều hòa tự miễn (AIRE) đã cải thiện sự hiểu biết của chúng ta về các con đường trong việc thiết lập và duy trì dung nạp tự thân. Gen AIRE mã hóa một yếu tố phiên mã trong tủy tuyến ức, đóng một vai trò quan trọng trong việc thiết lập dung nạp trung ương (được mô tả chi tiết ở phần sau của chương này). Sự xóa đoạn ở gen tương đồng AIRE ở chuột dẫn đến bệnh tự miễn đa cơ quan, trong khi các đột biến ở gen AIRE của người dẫn đến APS tuýp 1.
Dung nạp ban đầu được phát triển trong tử cung với các tế bào T và B đóng vai trò quan trọng. Các tế bào T và B được sản xuất liên tục trong suốt cuộc đời bởi các tế bào gốc tạo máu của tủy xương, với các tiền chất tế bào T di chuyển đến tuyến ức để trưởng thành hơn nữa. Mặc dù tuyến ức teo đi sau tuổi dậy thì, mô tuyến ức còn lại có thể cung cấp cho sự phát triển của tế bào T trong suốt cuộc đời.
Mặc dù các tế bào T yêu cầu phơi nhiễm với liều lượng nhỏ kháng nguyên để đạt được dung nạp trong quá trình phát triển ở tuyến ức, nhưng cần liều lượng kháng nguyên lớn hơn để gây ra dung nạp tế bào B, và dung nạp tế bào B thường chỉ tồn tại trong thời gian ngắn. Dung nạp là đặc hiệu về mặt miễn dịch và được gây ra ở các tế bào lympho đang phát triển sớm trong đời; tuy nhiên, nó cũng có thể được gây ra ở các tế bào lympho trưởng thành khi các tín hiệu đồng kích thích vắng mặt tại thời điểm tương tác của peptide với TCR.
Dung nạp Tế bào T Trung ương và AIRE
Các tế bào T chủ yếu được “giáo dục” để phân biệt tự thân và không tự thân khi chúng phát triển ở tuyến ức. Trong vỏ tuyến ức, các tế bào T CD4+CD8+ (dương tính kép) mang TCR α/β có khả năng liên kết với các phức hợp peptide tự thân/MHC được chọn lọc để tồn tại, trong khi các tế bào T có TCR không liên kết được sẽ trải qua quá trình apoptosis. Có tới 99% các tế bào thymo đang phát triển trải qua quá trình apoptosis và không bao giờ đến được ngoại vi (xem Hình 22.1). Điều này được gọi là chọn lọc dương tính và được thực hiện bởi các tế bào biểu mô nuôi dưỡng vỏ tuyến ức trình diện kháng nguyên (CTEC), mang MHC I và MHC II. Các tế bào T liên kết với MHC I sẽ hướng tế bào T đang phát triển theo con đường tế bào T CD8, trong khi những tế bào liên kết với MHC II sẽ phát triển thành tế bào T CD4. Các tế bào được chọn lọc dương tính di chuyển qua vùng nối vỏ-tủy vào tủy, nơi diễn ra một điểm kiểm tra thứ hai. Mặc dù các tế bào T phải có khả năng liên kết với MHC/peptide tự thân để thiết lập dung nạp, nhưng các tế bào liên kết quá chặt với các kháng nguyên tự thân có khả năng gây ra phản ứng tự miễn và do đó trải qua chọn lọc âm tính và apoptosis. Quá trình chọn lọc dương tính các tế bào T để chọn lọc các tế bào T liên kết MHC (trong vỏ tuyến ức) và chọn lọc âm tính các tế bào T liên kết chặt chẽ với các kháng nguyên tự thân (trong tủy), giải thích cho dung nạp miễn dịch trung ương (tuyến ức). Các tế bào T dương tính đơn biểu hiện CD4 hoặc CD8 sau đó di chuyển ra ngoại vi và các cơ quan bạch huyết thứ cấp.
Vui lòng đăng nhập để xem toàn bộ nội dung
Tài khoản thành viên cho phép tiếp cận đầy đủ mọi nội dung sẵn có trên website yhoclamsang.net, "Uptodate phiên bản tiếng Việt" cập nhật 24/7, sẵn sàng mọi lúc, mọi nơi.
ĐĂNG NHẬP THÀNH VIÊN
Tiếp tục với tài khoản của bạn
Chỉ cần đăng nhập để tiếp tục đọc đầy đủ bài viết.
 ĐỌC THỬ
 ĐỌC THỬ
 ĐỌC THỬ
 ĐỌC THỬ